
同一轮筛选,联合锁定细胞结合与激动活性候选;同一克隆诱导分泌,再分清游离态与接触呈递态的激动表现。
01|anti-CD3 VHH 的难点,在于获得真正符合应用需求的功能候选
anti-CD3 抗体是 T 细胞衔接器(TCE)连接 T 细胞与靶细胞的关键模块。对于双抗、多抗开发,CD3 结合端的选择直接关系到细胞识别、激动强度与后续构型设计。发现一个蛋白结合阳性的 VHH,只是进入这条研发路径的起点。
CD3 位于天然细胞表面的 TCR-CD3 复合体中。重组抗原结合阳性,不能替代天然细胞结合;细胞结合阳性,也不能单独定义激动活性。在一项 CD3 抗体发现研究的首轮筛选中,378个候选约20%结合重组 CD3δε,但仅11个特异结合 CD3 阳性 Jurkat 细胞。这一筛选落差,说明天然细胞识别应当尽早进入 CD3 候选评价。Trinklein et al., 2019
面向TCE 开发,还要识别激动发生的条件:候选是否游离即可引发响应,还是需要在细胞接触呈递条件下才出现激动?项目希望的通常是在有效靶细胞桥接时激活,而在缺少靶细胞桥接时保持低背景。靶细胞依赖的 CD3 激动模式已有原始研究支持。靶细胞依赖的 CD3 双抗研究
anti-CD3 VHH 发现需要同时推进三个判断:结合天然细胞、产生所需激动、具备合适的激动条件。
02|常见结合优先流程,把 CD3 最关键的判断留到了后面
短板一:筛到高亲和力结合者,仍未回答它如何激动。以结合或亲和力为主要终点的常见噬菌体、酵母展示流程,不能从结合排名直接读出CD3 激动模式。CD3 抗体发现研究也指出,偏重高亲和力结合者的发现路径,会增加寻找不同激动强度候选的难度。Trinklein et al., 2019
结合相近也可能产生不同功能。膜呈递anti-CD3 的原始研究观察到,相近的细胞结合表现可对应不同激动响应,说明呈递方式本身就是功能变量。对 CD3 这样的靶点,功能判断越后置,早期结合排名与应用需求之间的偏差就越晚暴露。Chen et al., 2017
短板二:富集信号可能夹杂体系背景,增加候选排查负担。噬菌体抗体筛选研究记录了针对抗原融合伴侣的结合者,且反筛未完全消除这类候选;另一项研究指出,噬菌体载体本身与特定靶蛋白的背景相互作用也可干扰富集与判读。由此得到的结合阳性,仍要经过特异性与功能复核。Schofield et al., 2007、Lamboy et al., 2008
短板三:从候选到功能,常需跨越回收、重构与表达。单B 细胞或展示文库获得候选之后,常规流程还要回收序列、重组表达,再进入功能检测;传统杂交瘤还需跨越融合、阳性克隆建立与稳定性等关卡。功能优先抗体发现研究将“从抗体识别到功能验证之间的大量克隆与表达工作”列为影响发现通量的重要瓶颈。Zhang et al., 2021
- 技术路线对比
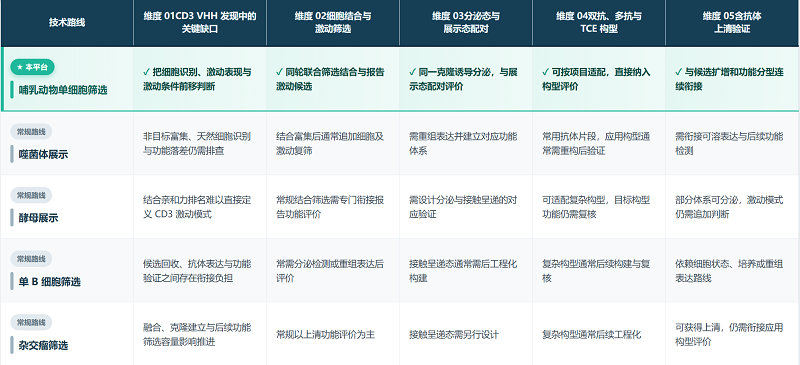
比较对象为常见结合优先工作流,具体实现取决于平台设计。对于CD3,关键差异在于:细胞识别与功能是在初筛时共同决定候选去留,还是留到候选回收后再逐项补测。
03|我们的技术:一轮联合筛选,直接推进功能候选
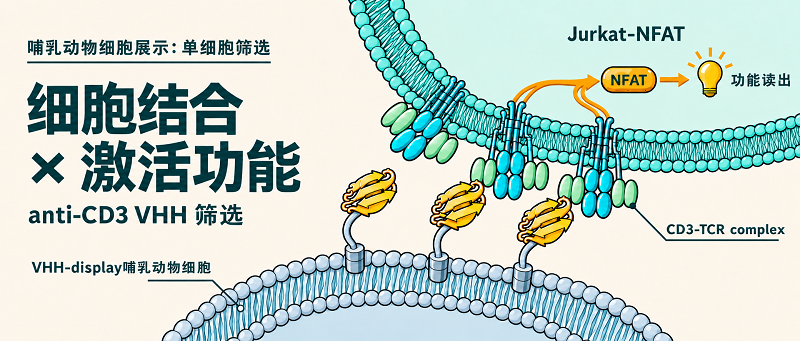
纳博生命将CD3 阳性报告细胞直接引入哺乳动物细胞展示筛选场景。候选 VHH 展示于单个工程化哺乳动物细胞表面,与报告细胞接触;细胞结合或接触表型和报告响应共同参与克隆判断,将细胞识别与结合后的激动表现纳入同一轮筛选。
一轮联合筛选,直接获得兼顾细胞结合与报告激动表现的候选克隆。功能不再只是结合筛选结束后的补测项,而是筛选起点就参与候选去留的依据,有助于更早识别“能够结合、却缺少所需激动表现”的候选。
VHH-display 细胞 + CD3 报告细胞 → 同轮判断细胞结合与激动表现 → 诱导分泌 → 激动模式分型
在发光报告体系中,功能响应以RLU 值量化,并对应到可追踪的展示细胞克隆。克隆可持续培养与扩增,便于复核,也可诱导分泌形成含抗体培养上清。这样,展示态与游离态评价能够围绕同一候选连续展开。
这一设计的价值,是把筛选目标从单一结合信号,推进到天然细胞上的识别、激动表现,以及激动发生的条件,使anti-CD3 候选更早接受应用需求的检验。
04|从 VHH 到双抗、多抗和 TCE,让构型直接进入筛选
对于TCE,CD3 结合端与靶细胞结合端的组合方式,也是功能评价的一部分。只在单独的结合域层面完成筛选,后续转换构型时,仍需要重新确认细胞桥接与激动表现。
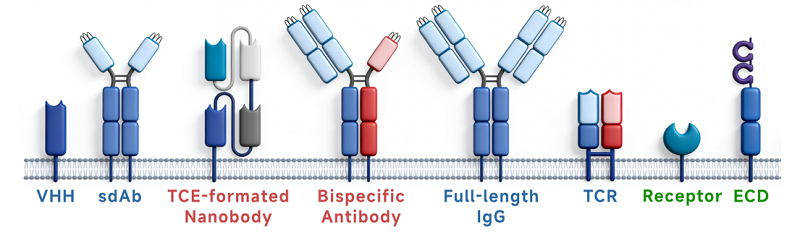
哺乳动物细胞表达环境支持VHH 融合体以及经适配的双抗、多抗设计。候选 VHH 可进一步构建为 TCE,也可在平台兼容的复杂构型中直接开展展示评价,使候选发现与应用构型之间更紧密衔接。已有研究分别展示了含 CD3 结合端的双特异构型展示,以及哺乳动物文库与单细胞功能筛选的衔接能力。
根据项目设计,单细胞展示可适配VHH 融合体、双抗、多抗及 TCE 等构型,让 CD3 结合模块及其组合方式更早进入细胞结合与功能评价。
- 哺乳动物细胞多构型展示
05|SP34展示细胞激动活性验证:D:R 比例变化下的 NFAT 报告响应
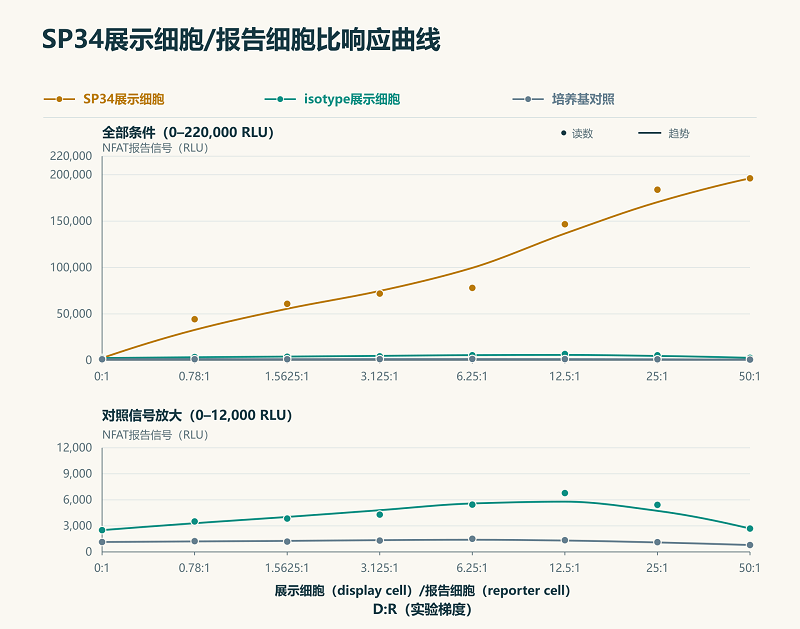
在SP34 细胞展示验证中,以展示细胞(display cell)/报告细胞(reporter cell)比(D:R)为横轴,同时比较 SP34展示细胞、isotype展示细胞和培养基三组的 Jurkat-NFAT 报告信号,可以更直观地观察细胞呈递条件与功能响应的关系。
在所测0.78:1 至 50:1 的展示细胞/报告细胞比范围内,SP34 展示组的报告信号均高于 isotype 展示组和培养基对照,并随展示细胞/报告细胞比升高而增强。
在50:1 时,SP34 展示组为 196,180 RLU,isotype 展示组为 2,694 RLU,培养基组为 797 RLU。在 0:1 时,两展示组信号接近,分别为 2,441 RLU 与 2,512 RLU。这组结果进一步支持细胞表面呈递 anti-CD3 抗体触发 Jurkat-NFAT 响应的可行性。
- SP34 D:R 响应曲线
06|最大的差异化优势:用双状态配对,分清激动发生的条件
获得具有细胞结合与报告激动表现的克隆后,下一步需要回答它适合怎样的激动场景。纳博生命通过同一克隆的展示态与分泌态配对评价,把“是否激动”进一步推进为“在什么呈递条件下激动”的功能分型。
- 展示态(cell-cell contact 模式):VHH-display 细胞与 CD3 报告细胞接触,读取接触呈递条件下的激动响应。
- 分泌态(上清模式):诱导同一候选分泌抗体,以含抗体上清作用于 reporter 细胞,评价游离状态下是否即可引发响应。
- 分泌态vs 展示态
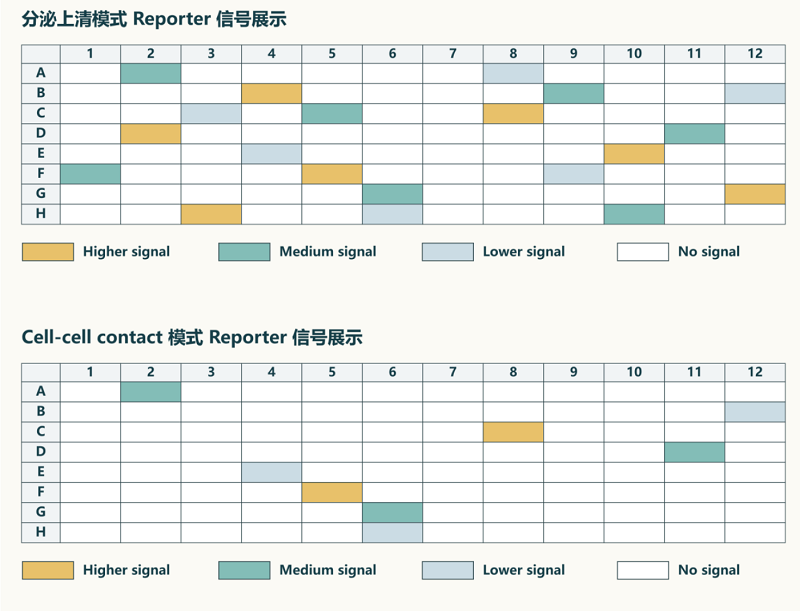
在匹配的评价条件下,结合上清抗体含量、展示水平与相应对照,可以区分两类候选:
- 游离即可激动型:展示态与分泌态均出现报告响应,提示其在所测游离条件下即可激动。
- 接触呈递响应型:展示态出现响应,而分泌态低背景或未见响应,识别出在所测条件下,仅在展示或 cell-cell contact 呈递模式观察到激动响应的候选。
同一轮判断结合与激动,同一克隆分清游离激动和接触呈递激动。这正是该策略面向anti-CD3 VHH 发现的核心价值:为需要靶细胞依赖激活的 TCE 项目,更早识别值得推进的接触呈递候选;也为需要游离激动的项目,保留相应的功能类型。
候选随后进入目标双抗、多抗或TCE 构型,继续确认双端桥接及相应功能,使早期功能分型与最终应用评价顺畅衔接。
- 案例展示|重组抗体报告激活响应
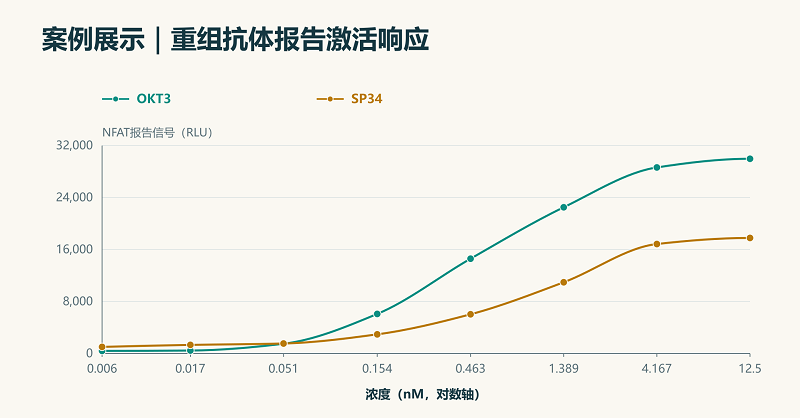
筛选克隆回收后,可通过重组表达获得抗体样品,再开展报告细胞激活评价,将单细胞筛选、分泌态评价与重组抗体功能复核衔接起来。
在重组抗体对照实验中,OKT3 与 SP34 的报告信号随抗体浓度升高而增强。在 12.5 nM 时,两者分别为 29,968 RLU 和 17,785 RLU。
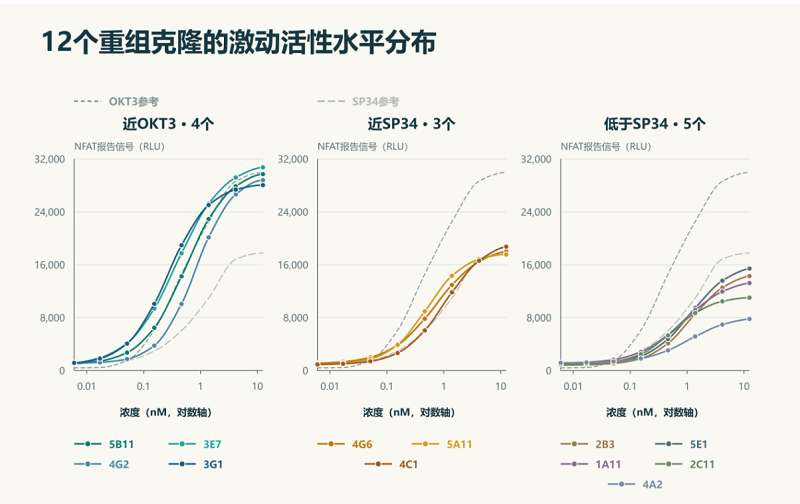
重组抗体响应可按接近OKT3、接近 SP34 及较低水平分层评价,为后续候选比较提供依据。
- 案例展示:抗体对照与12个单细胞筛选获得重组克隆呈现不同水平的激动活性响应
07|让 anti-CD3 VHH 发现更早直达功能与应用
CD3 候选的价值,取决于它能否识别天然细胞、能否产生所需激动,以及激动是否发生在项目需要的条件下。将这些判断全部后置,会让早期筛选持续依赖追加复筛与构型转换。
纳博生命以哺乳动物细胞展示为基础,开发了单细胞筛选技术,用同轮结合与激动筛选、同克隆展示态与分泌态配对、多构型评价及重组抗体复核,构建面向anti-CD3 纳米抗体的连续发现路径。该技术已经扩展至其他激动活性抗体筛选项目中。
面向TCE、双抗及多抗开发,欢迎与纳博生命交流您的 CD3 及其他靶点的筛选需求,让功能候选与激动模式更早成为研发决策的依据。